domingo, 19 de agosto de 2018

Citología vegetal (III)


Núcleo, retículo endoplasmático, aparato de Golgi y ribosomas


Núcleo. Excepto los tubos cribosos (liberianos) en estado adulto, todas las células vegetales presentan núcleo. En las meristemáticas, el núcleo es de gran tamaño; en las células del embrión pueden ocupar más del diámetro de la cavidad celular; en tanto que en las más diferenciadas el núcleo es menor.

En estado interfásico (de reposo), el núcleo presenta una estructura definida que se pierde al iniciarse la mitosis (forma de reproducción celular). En la interfase el núcleo tiene forma esférica aunque puede variar a elipsoidal, discoidal o alargada. Está limitado por una envoltura doble constituida por lípidos y proteínas insolubles; y por estudios hechos con el microscopio electrónico, la membrana externa presenta una serie de comunicaciones con el retículo endoplasmático. Por dentro de la envoltura nuclear existe una matriz llamada jugo nuclear o cariolinfa, en la que se encuentran incluidos la cromatina y uno o más nucléolos. La cromatina es un compuesto reticular constituido por proteínas y ADN; durante la división celular, la cromatina se organiza para formar los cromosomas que transfieren la información genética; el número y la configuración de estos es constante para cada especie. Los cromosomas son visibles sólo cuando el núcleo se halla en estado de división.  Los nucléolos son cuerpos densos y más o menos homogéneos. El número de nucléolos por núcleo es generalmente de uno, pero puede haber dos o más, rara vez están ausentes. Durante la división celular, el núcleo y los nucléolos desaparecen por completo y vuelven a aparecer cuando concluye el proceso de división celular.

El núcleo efectúa funciones vitales para la célula tales como: la síntesis proteica, control de las funciones celulares y dependiendo del código genético y durante la división celular, la transmisión de los caracteres hereditarios. La remoción del núcleo va seguida de la muerte de la célula.


Retículo endoplasmático. Aunque en un principio se consideró al protoplasma como un coloide homogéneo. Después se descubrió que estaba atravesado por una serie de membranas dobles (pares de membranas) a manera de túbulos simples o ramificados que pueden estar comunicados con la membrana plasmática y la nuclear; a esta estructura se le denominó retículo endoplasmático. Las membranas pueden plegarse y constituir cisternas o vesículas y en ocasiones pueden continuarse entre una célula y otra a través de los plasmodesmos. La naturaleza química de estas membranas es de lípidos y proteínas. El retículo puede o no estar asociado con los ribosomas, en el primer caso se le llama retículo rugoso y en el segundo, retículo liso. Al retículo se le atribuyen las siguientes funciones: transporte, y almacenamiento de proteínas, interviene en la formación de la pared celular y junto con el citoplasma interviene en la formación de ácidos grasos.


Aparato de Golgi (dictiosoma). En las células animales, los dictiosomas forman el aparato de Golgi. En 1956 fueron reconocidas estas estructuras en las células vegetales, ya que en éstas, no se encuentra el cuerpo de Golgi como en las células animales, organizado como un complejo cerca del núcleo, sino que están libres en el citoplasma. Los dictiosomas están constituidos por cisternas o discos, formados por membranas dobles y cercanas entre sí. En los vegetales, los dictiosomas sintetizan material que se utiliza en la pared celular, para ello, se desprenden de las cisternas, vesículas conteniendo el material sintetizado, las cuales emigran hacia la pared donde descargan su contenido, y se fusionan con ésta, y de la misma forma actúan en la telofase para formación de la placa celular.


Ribosomas
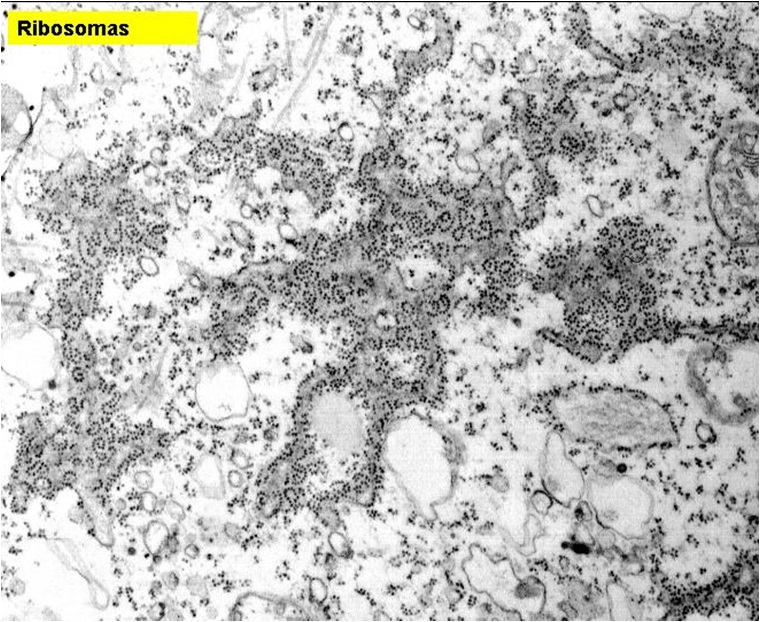
Gránulos compuestos de ARN y proteínas; algunos unidos al retículo endoplasmático rugoso, otros libres en el citoplasma.

Los ribosomas son organelos que se encuentran en todas las células, tanto procariotas como eucariotas. Se encargan de la síntesis proteínica. Estos organelos se pueden apeciar como pequeños gránulos opacos al paso de electrones (en microscopía electrónica), que se asocian a la matriz externa del retículo endoplásmico (rugoso). A estos gránulos se le ha llamado de Palade porque fue este investigador quien los descubrió en 1955; ahora el nombre más aceptado es el de ribosomas. Miden aproximadamente 10 nm y están constituidos por ribonucleoproteína.


Brachet y Casperon fueron los primeros (1941) en sugerir que las células ricas en ARN están relacionadas con la síntesis de proteínas. Por ejemplo, en los reticulocitos en estado de diferenciación (es decir, eritrocitos de mamífero, pero en estado inmaduro) se presenta una disminución tanto en el contenido de ácido ribonucleico (ARN), como en la velocidad de incorporación de aminoácidos a la molécula proteínica; en cambio, en culivos de bacterias en crecimiento sucede todo lo contrario. Es así que en Escherichia coli se ha podido calcular que existen alrededor de 10000 ribosomas por célula. Los ribosomas en este caso se hallan en forma libre, como sucede en toda célula procariótica que no posee retículo endoplásmico.

Los ribosomas tienen una estructura sumamente compleja, por ejemplo, los ribosomas de E. coli denominados 70S están constituidos por dos subunidades que pueden ser separadas; una es mayor, de 50S y otras más pequeña, de 30S (el término S se refiere al tamaño que se determina por la velocidad de sedimentación medida en unidades Svedberg, o sea, la velocidad a la cual una partícula sedimenta cuando es centrifugada). El ribosoma completo (70S) tiene un peso de alrededor de 2.7 millones de Daltones y contiene 65% de ARN y 35% de proteínas.

Las subunidades pequeñas (30S) contienen a su vez una molécula de ARN de 16S y 21 diferentes proteínas ribosomales. La subunidad de 50S contiene por su parte un ARN de 5S y otro ARN con un valor de 23S, además de 34 diferentes moléculas de proteínas ribosomales.

Los ribosomas de organismos eucariotes son esencialmente idénticos a los de E. coli, aunque difieren en el tamaño de la subunidades y en el número de proteínas ribosomales. 

Polisomas o polirribosomas vistos con el microscopio electrónico. Los de (a) provienen de reticulocitos de conejo y están ocupados en la traducción de ARNm de la hemoglobina y los de (b) proviene de células de glándulas salivares de la mosca de agua Chironomus thummi. En (b) se puede ver como emerge la cadena polipeptídica naciente de cada ribosoma. Su longitud incrementa al avanzar la traducción, desde la izquierda (5’) a la derecha (3’) del ARNm.

Cabe mencionar, también, que la función biológica de los ribosomas es altamente compleja, ya que involucra el reconocimiento y la capacidad de unirse al ARN mensajero formando los polisomas, y a los ARN de transferencia específicos para aminoácidos; intervienen en la formación de los enlaces peptídicos y en su traslocación física a lo largo del ARN mensajero. En este sentido se ha logrado, gracias a las investigaciones en especial de M. Nomura y sus colaboradores, el poder delinear varias de las principales características del autoensamble de los ribosomas y la secuencia necesaria en los procesos de ensamblado. Por medio de estas investigaciones se ha llegado a saber que cuando se exponen las subunidades 30S de los ribosomas de E. coli a altas concentraciones de sal, se origina la pérdida de siete distintas proteínas ribosomales, dejando un "núcleo" con un valor de 23S que consiste de ARN y proteína. Puede observarse, entonces, que esos "núcleos" de ribosoma ya no tienen actividad en la síntesis de proteínas.

De las 7 proteínas solubilizadas se han podido purificar cinco y las otras dos se han obtenido como mezcla. Se sabe que las cinco proteínas puras tienen diferente composición en aminoácidos. Con los resultados anteriores ahora es posible reconstituir ribosomas activos en la síntesis de proteínas al mezclar el "núcleo" de 23S con las proteínas previamente solubilizadas, ya que al añadir a esta mezcla las subunidades ribosomales de 50S se obtiene un material capaz de sintetizar una cadena polipeptídica, pero, por supuesto, se deben añadir los componentes esenciales para la síntesis de proteínas. Sin embargo, cuando se elimina cualquiera de las cinco proteínas purificadas, la síntesis tiende a disminuir en forma drástica.

De esta forma, y con otros experimentos de tipo genético tendientes a conocer las proteínas que constituyen los ribosomas se ha podido llegar a entender cuál es la función que desempeñan dichas proteínas como distintos componentes ribosomales en la síntesis de proteínas.

Recientemente, se ha logrado avanzar también en lo que se refiere a la reconstitución de los ribosomas con las subunidades de 50S.

El significado de los resultados de ensamble obtenidos a partir de las subunidades de 30S puede resumirse en lo siguiente:

1. Toda información necesaria para el ensamble correcto está en la estructura de los compuestos de este organelo y no se requieren otros factores. O sea que el proceso tanto in vitro como posiblemente in vivo es de autoensamble.

2. Se puede asegurar por medio de estos experimentos de reconstitución cuándo un compuesto es esencial para el ensamble del ribosoma, o para una función determinada. En este sentido se ha podido identificar el componente responsable para la sensibilidad al antibiótico estreptomicina que inhibe la iniciación en la síntesis de proteína.


Fuente: González Embarcadero, Antonia; Cedillo Portugal, Ernestina; Díaz Garduño, Lucina. 2011. Morfologiía y anatomía de las plantas con flores. Universidad Autónoma Chapingo. México.

sábado, 18 de agosto de 2018

Citología vegetal (II)

Pared celular


Esta estructura es típica de las células vegetales y su presencia se considera como un carácter básico para diferenciarlas de las células animales. La pared celular es el resultado de la secreción del protoplasto, se localiza en el exterior de la membrana plasmática y siendo la celulosa su principal componente, influye en la forma de la célula, proporcionándole además rigidez. La pared tiene varias funciones, tales como: protección de la célula, sostén a los tejidos y resistencia externa para mantener el equilibrio osmótico.

Partes de la pared celular. Está constituida por dos o tres capas llamadas lámina media o sustancia intercelular, pared primaria y pared secundaria. En cuanto a su localización la lámina media está colocada entre dos células vecinas. Las paredes primaria y secundaria son individuales para cada célula.


Lámina media o sustancia intercelular. Se forma durante el proceso de división celular, surgiendo como parte del fragmoplasto o placa celular entre las dos células hijas; es producida en parte por cada una de las dos masas de protoplastos de estas células. En células jóvenes la lámina media es delgada, pero conforme maduran, se depositan la pared primaria y la pared secundaria. La sustancia intercelular se haya entre las paredes primarias de dos células contiguas y la secundaria se dispone junto a la primaria y hacia la cavidad central de la célula. En tejidos adultos la sustancia intercelular es difícil de identificar, por lo que el término lámina media no es muy apropiado, pero su uso es muy común. Su función es actuar como cemento entre células vecinas. En la práctica, esta lámina es difícil de distinguir ya que generalmente se confunde con la pared primaria. Está compuesta de pectosa combinada con calcio y magnesio (pectatos de calcio y magnesio). El resto de la pared celular está constituida de celulosa (C6H10O5)n' excepto en células de madera, corcho, epidermis y algunos tejidos de tallo y hojas.

La pectosa está presente en gran cantidad en la lámina media y en pequeñas cantidades en el resto de la pared celular, la cual con facilidad cambia a pectina. La pectina en cantidad suficiente, da consistencia gelatinosa o tiesa a los frutos. La celulosa es un material orgánico de gran importancia económica no usado como alimento por el hombre, pero sí puede ser digerido y empleado por ganado y otros herbívoros. Entre los materiales de celulosa o de celulosa mezclada con otros materiales están el algodón, el lino, el cáñamo y la madera. También es empleada en la producción de ciertas sustancias en la industria, como pólvora de algodón, barniz, celuloide, seda artificial (rayón), etc. 

Pared primaria. Es la primera pared que se forma en el desarrollo de la célula y en muchos tipos de células es la única. Esta pared tiene la capacidad de crecer en superficie al mismo ritmo de la célula; una vez que la célula termina su crecimiento, la pared primaria deja de crecer en superficie y puede iniciar un crecimiento en espesor. Las paredes primarias están asociadas a protoplastos vivos como en las células de meristemos, parénquima, cámbium, etc. La pared primaria junto con la sustancia intercelular son los componentes de la pared celular de todas las células vegetales. 

La pared primaria está compuesta por celulosa, hemicelulosa y pectatos. El grosor de la pared primaria puede variar de acuerdo con los diferentes estados fisiológicos por los que pasa la célula, ya que ciertas sustancias químicas pueden ser eliminadas. Por ejemplo, el cámbium presenta cambios estacionales en su grosor, según su actividad meristemática, las gruesas paredes celulares primarias del endospermo de algunas semillas (dátil), son digeridas durante la germinación.


Pared secundaria. Sigue a la primaria en orden de aparición. Es típica de las células que en su madurez pierden el protoplasto, pasando a formar elementos muertos como traqueidas, vasos leñosos, fibras y esclereidas. O sea que la pared secundaria es característica de células especializadas, que tienen cambios irreversibles durante su desarrollo. Sin embargo, células con protoplastos vivos, como los radios de xilema y el parénquima del xilema pueden tener paredes secundarias. Esta pared inicia su formación una vez que la célula ha cesado su crecimiento, su espesor varía dependiendo de la célula de que se trate, su crecimiento en espesor está dirigido hacia la cavidad (lumen) celular. Su composición es de celulosa y hemicelulosa, pero puede ser modificada por acumulación de lignina y otras sustancias diversas. 


Impregnaciones de la pared vegetal


Además de la constitución química mencionada para la pared celular, ésta puede poseer impregnaciones de otros compuestos químicos tales como:

Lignina
Suberina
Cutina
Sílice y carbonato de calcio
Gomas y mucílagos
Taninos y antocianinas

Lignina. Es una sustancia que da dureza y puede impregnar a la tres partes de la pred celula (lámina media, pared primaria y pared secundaria). La lignina es polímero con alto contenido de carbono, diferente a los carbohidratos. En especial consiste de unidades de fenilpropano (C6C3), es un producto final del metabolismo y su consistencia es rígida.

La lignificación se inicia en ciertas partes de la pared primaria, posteriormente se extiende hacia la lámina media y a la pared secundaria. En los elementos del xilema con paredes secundarias en forma de anillos y hélices, la pared primaria no se lignifica.

Suberina. Sustancia grasa, no se funde ni es soluble con los disolventes de las grasas. Constituida de ácidos grasos. La suberina se encuentra en las paredes de las células de la peridermis, endodermis y exodermis. Al proceso de impregnación de las paredes con suberina se llama suberización. En tejidos superficiales de la planta, la suberina reduce la transpiración.

Cutina. Sustancia de naturaleza grasa, no es soluble con los disolventes de las grasas, ni se funde. La cutina forma una capa continua, llamada cutícula, sobre la superficie de la epidermis de las partes áereas de la planta. Asimismo, la cutina se localiza junto con la celulosa en las paredes externas de las células epidérmicas. El paso de impregnación de las paredes con cutina es la cutinización, y el de formación de la cutícula es cuticularización. Las ceras pueden estar en la superficie de la cutícula en diversas formas. La presencia de cera da coloración verde-claro a tallos, hojas y frutos, en los que se encuentre. La cutina protege a la planta contra la desecación al disminuir la transpiración y también evita la lixiviación (lavado) en hojas, tallos y frutos, durante las lluvias. La cutícula de la apariencia brillosa a frutos y hojas.

Sílice y carbonato de calcio. El sílice se encuentra en las paredes celulares de epidermis de diatomeas, equisetos, algunas palmas, gramíneas y ciperáceas, cuyas hojas y tallos se endurecen con el desarrollo. El carbonato de calcio está asociado con las paredes de algunas células epidérmicas del haz, formando cistolitos, por ejemplo en las hojas de: hule ornamental (Ficus elastica), acantáceas como hierba del toro (Carlowrightia arizonica), calabaza (Cucurbita) e higo (Ficus carica).

Gomas y mucílagos. Las gomas y mucílagos, presentan una constitución química compleja. Están relacionadas con las sustancias pécticas y tienen en común la propiedad de hincharse con el agua.

En especial, las gomas son productos de desarreglos fisiológicos o patológicos en los que existe una degeneración de la pared y del contenido celular, a este proceso se le llama gomosis. Se disuelven de forma parcial en el agua y son insolubles en alcohol. Las gomas se almacenan en depósitos especiales de raíces y tallos de algunas plantas, cuando alcanzan gran cantidad se rompen y salen al exterior. Ejemplos comunes son los árboles frutales como durazno (Prunus persica), almendro (Prunus amygdalus), chabacano (Prunus armeniaca), ciruelo (Prunus domestica), etc. La goma arábiga es el producto de Acacia senegal.

Los mucílagos se instalan entre las paredes de las células vecinas separándolas, o en capas concéntricas en el interior de las mismas reduciendo su cavidad hasta que mueren. En malva (Malva), malvavisco (Malvaviscus arboreus), y en semillas de lino (Linum usitatisimum) y en algas rojas (Rodofíceas) y en algas pardas (Feofíceas), ambas del reino protista. En medicina, los mucílagos se emplean como emolientes o laxantes y en la industria para hacer papel y telas. El agar-agar se extrae de ciertas algas rojas (Rodofíceas), se usa en los laboratorios para solidificar los medios de cultivo de bacterias y hongos. También hay mucílagos en plantas xerófitas como cactáceas.

Taninos y antocianinas. Son compuestos fenólicos de elevado peso molecular. Abundan en las hojas de muchas plantas, en la peridermis, en frutos inmaduros, cubiertas de semillas e impregnando las paredes del tejido suberoso. Estas sustancias protegen al protoplasto contra la desecación, putrefacción y ataque por animales.

Puntuaciones y plasmodesmos


La pared celular no es homogénea en su espesor, ya que se limitaría la comunicación entre los protoplastos de células vecinas; existen en la pared depresiones o cavidades llamadas puntuaciones. Una puntuación es un adelgazamiento de la pared primaria y una interrupción de la pared secundaria (si existe), por lo que en este punto la pared celular está constituida únicamente por la pared primaria adelgazada y la lámina media. Las células vecinas pueden mantener comunicación, porque las puntuaciones de las células vecinas, formando pares de puntuaciones; existen también llamadas puntuaciones ciegas que son aquellas que no están por pares. Un par de puntuaciones estará limitado al centro por la lámina de cierre constituida por la lámina media y las dos paredes primarias adelgazadas de dos células vecinas.


Existen varios tipos de puntuaciones incluyendo las simples y las rebordeadas. Las simples son las descritas anteriormente; las rebordeadas o areoladas, son aquellas en las que la pared secundaria se arquea sobre la cavidad de la puntuación, a veces en la lámina de cierre existe un espesamiento llamado toro, este tipo de puntuación es típica de las coníferas. Las puntuaciones simples no presentan el arqueamiento de la pared secundaria y carecen de toro; y se presentan en ciertas células parenquimáticas, en fibras extraxilemáticas y en esclereidas. Las puntuaciones rebordeadas se encuentran principalmente, en células mecánicas (fibras) y en las conductoras de agua del xilema (elementos de los vasos y traqueidas), también en fibras y esclereidas que no pertenecen al xilema.


Un par de puntuaciones comunica el protoplasto de células vecinas, además, la lámina de cierre, que limita a un par de éstas, presenta una serie de interrupciones o poros a través de los cuales pasan finos hilos de protoplasto llamado plasmodesmos. Por tanto, se puede decir que en los vegetales el protoplasma es continuo, a través de los plasmodemos, de aquí Hanstein, propone la teoría del simplasto.

Protoplasto y membrana plasmática

Protoplastos. Las células vegetales adquieren esta estructura después de perder la pared celular.

Este término introducido por Hanstein, abarca el contenido protoplasmático total del interior de la célula y la membrana plasmática. Es considerado la unidad biológica fundamental. El protoplasto está diferenciado en regiones y organelos celulares:


Membrana plasmática o plasmalema. La membrana plasmática es la estructura que limita el protoplasto de todas las células tanto animales como vegetales. Es delgada y flexible, está constituida por una doble capa de moléculas lípidicas, en las que están inmersas varias proteínas de membrana; esta doble capa lípidica es fluida y puede difundir rápido dentro de cada una de las dos capas; la composición de cada capa es distinta ya que tienen diferentes mezclas de lípidos. En las células vegetales la membrana plasmática se localiza dentro de la pared celular. No debe confundirse con la pared celular formada de celulosa que es una unidad muerta.

Bicapa lípidica, mostrando la estructura de la membrana plasmática.

Estructura de la membrana plasmática, mostrando algunos de sus componentes.

La membrana plasmática no es continua, ya que se prolonga hacia el interior de la célula para constituir el retículo endoplasmático, el cual a su vez está conectado con la membrana nuclear, por lo que podemos entender que gran parte del contenido de la célula está representado por membranas de este tipo. Tiene permeabilidad selectiva. Las sustancias solubles en lípidos, se difunden rápidamente a través de la membrana, en tanto que las sustancias no solubles en lípidos tal como el agua lo hacen a través de espacios en la capa lípidica. El paso de iones con carga eléctrica se supone que se efectúa a través de poros cargados eléctricamente, así, los poros con carga positiva atraen a los iones negativos, en tanto que los de carga negativa atraen a los cationes. En ocasiones existe paso a través de la membrana plasmática, en contra de un gradiente de concentración, por lo que se le llama transporte activo y para ello se requiere energía.

La membrana plasmática también interviene en los procesos de fagocitosis (ingestión de partículas por medio de seudópodos) y de pinocitosis (invaginación de la membrana y formación de vesículas conteniendo líquidos que quedan incluidos en el citoplasma).

Inclusiones protoplasmáticas. Citoplasma

Son los componentes vivos dentro de la célula que efectúan una actividad metabólica más o menos constante. Como inclusiones protoplasmáticas están:


Hialoplasma o citoplasma. En el protoplasto de una célula típica hay una estructura oval o redondeada llamada núcleo. Todo el protoplasma que está  fuera del núcleo se llama citoplasma y forma la mayor parte del protoplasto de una célula. El citoplasma es una sustancia coloidal homogénea, en la cual se encuentran contenidos el resto de los organelos. Está, en su mayor parte constituido por agua en proporciones entre 60 a 80% y en ella hay sustancias inorgánicas y orgánicas en solución verdadera o en estado coloidal. La mayor parte de estas sustancias son proteína que, además de carbono, oxígeno, hidrógeno y nitrógeno, contienen azufre, fósforo y a veces yodo. Otras sustancias son carbohidratos, grasas, calcio, potasio, magnesio, fósforo, azufre y hierro. El citoplasma presenta un movimiento continuo llamado ciclosis, en el cual arrastra las inclusiones. Este movimiento puede observarse en las células de las hojas delgadas de Elodea canadensis, el protoplasto que rodea a una vacuola central se mueve a lo largo de la pared celular en una determinada dirección que puede cambiar.

Fuente: González Embarcadero, Antonia; Cedillo Portugal, Ernestina; Díaz Garduño, Lucina. 2011. Morfologiía y anatomía de las plantas con flores. Universidad Autónoma Chapingo. México.

viernes, 17 de agosto de 2018

Citología vegetal (I)


De acuerdo a la teoría celular, la célula es la unidad básica anatómica y funcional de los seres vivos. Esta teoría fue dada por Schleiden (1838) para los vegetales; por Schwann (1839) para animales y en ambos casos se determina que todos los seres vivos están constituidos por células. Existe otra teoría, la del simplasto de Hanstein (1880), la cual considera que debido a los plasmodesmos de las células, existe continuidad del protoplasto en todo el organismo, por lo que la célula no sería la unidad básica, sino que considera como unidad al organismo en total, constituido por un simplasto (conjunto de protoplastos conectados entre sí por los plasmodesmos). Sin embargo, para los estudios anatómicos de los seres vivos. Es conveniente reconocer a la célula como la unidad básica, siguiendo la teoría celular.


Hay seres vivos formados por una sóla célula y se llaman unicelulares, los pluricelulares están constituidos por numerosas células reunidas en grupos, con forma, estructura y funciones especiales, que forman los tejidos. La ciencia que se encarga del estudio de las características de las células es la citología y la que estudia los tejidos se llama histología. Fue hasta 1667 que Robert Hooke observó por primera vez en el microscopio las células muertas de un tapón de corcho. A partir de entonces se ha ido profundizando en el estudio de la citología e histología, a la vez que se han perfeccionado diferentes tipos de microscopios como: binocular, campo claro, contraste de fases, fluorescencia, campo oscuro y electrónico; además, métodos citoquímicos de alta precisión, con lo que se ha demostrado que la célula es una estructura dinámica, capaz de aprovechar energía, sintetizar proteínas, realizar diferentes procesos metabólicos y con la presencia de ADN, efectuar su multiplicación.


Las células vegetales difieren de las de los animales en que: a) las células de los vegetales están rodeadas de una pared rígida llamada pared celular, las de los animales no poseen pared celular; b) la mayoría de los vegetales no pueden desplazarse, en cambio la mayoría de los animales sí se desplazan, con excepciones como anémonas y esponjas que no son fijos al sustrato y c) los vegetales tienen la capacidad de elaborar compuestos orgánicos como azúcares, a partir de compuestos inorgánicos como agua y sales minerales, mediante el proceso de fotosíntesis y en presencia de luz y dióxido de carbono; los animales son incapaces de elaborar sus alimentos, los toman ya elaborados de las plantas o de otros animales.


El orden para hacer la descripción de las partes de la célula vegetal, es de acuerdo con su localización del exterior hacia el interior de ésta:
  

Pared celular

Partes de la paredd celular:

Lámina media o sustancia intercelular
Pared primaria
Pared secundaria
Impregnaciones de la pared celular:
Lignina
Suberina
Sílice y carbonato de calcio
Gomas y mucílagos
Taninos y antocianinas
Puntuaciones y plasmodesmos
Protoplasto
Membrana plasmática
Inclusiones protoplasmáticas:
Hialoplasma
Núcleo
Retículo endoplasmático
Ribosomas
Dictiosomas o cuerpos de Golgi
Mitocondrias
Lisosomas
Esferosomas
Plastos (plástidos o plastidios):
Protoplastos
Cloroplastos
Cromoplastos
Leucoplastos
Inclusiones no protoplasmáticas:
Vacuolas
Sustancias ergásticas:
Grasas
Almidón
Proteínas
Taninos
Cristales

Las células vegetales exhiben gran diversidad en forma, tamaño, estructura y función. Su forma puede ser tabular (tabiques), cúbica, esférica, prismática, alargada de fibra, poliédrica, isodiamétrica, cilíndrica, estrellada, ovalada, entre otras. En cuanto al tamaño, algunas células se miden en micras (el promedio se encuentra entre 19 y 100 micras), otras se miden en milímetros y aún en centímetros, como las fibras de ciertas especies de plantas.

También las células vegetales difieren en el grosor de sus paredes y en la naturaleza del material del cual su pared celular está impregnada. En las células vivas como las que forman el tejido llamado parénquima, las paredes celulares son delgadas, ya que sus funciones son de relleno, fotosíntesis, intercambi de nutrientes y de reserva. Pero en tejidos de sostén formados por fibras, sus paredes celulares están engrosadas; también en el de conducción de agua y sales minerales llamado xilema, los vasos de este tejido están formados por elementos muertos con paredes celulares engrosadas. En las partes duras de frutos y semillas hay células muertas de sostén llamadas esclereidas, con paredes muy engrosadas.

La pared celular está compuesta en su mayoría por un carbohidrato llamado celulosa y en parte de pectosa. Las paredes engrosadas de elementos muertos pueden estar impregnadas de liginina, suberina, entre otras. Las células epidérmicas están recubiertas en su superficie externa de una sustancia grasa llama cutina.

Fuente: González Embarcadero, Antonia; Cedillo Portugal, Ernestina; Díaz Garduño, Lucina. 2011. Morfologiía y anatomía de las plantas con flores. Universidad Autónoma Chapingo. México.

Movimiento de agua y solutos a través de las membranas celulares vegetales

Transporte en una célula eucariota ideal. Las moléculas y iones mostrados en esta célula compuesta de elementos animales y vegetales, s...